Sommes-nous faits pour la monogamie ?
Trois questions se cachent dans cette phrase, et la troisième ne se déduira jamais des deux premières
Publié le · Mis à jour le
0. La règle que personne n’a choisie
Il y a des règles qu’on discute, et il y a des règles qu’on ne voit plus. Nous nous accordons presque tous à trouver normal d’aimer une seule personne à la fois et de vivre avec elle seule, et cet accord est si général qu’il a cessé de ressembler à une règle. On peut traverser une vie entière sans l’avoir pesée une seule fois. Combien de décisions d’une existence supportent ce régime ?
On la croirait prise pour un fait de nature. La méta-analyse de Ha Na Yoo et Judith Smetana, publiée en 2022, ne permet pas de le dire : elle réunit dix-huit études et deux mille sept cent sept enfants, et porte sur une autre distinction, celle d’une règle morale et d’une convention (Yoo et Smetana 2022). Une règle peut échapper à l’examen faute d’une alternative qui se présente comme une option à peser ; cela ne suffit pas à établir qu’elle est prise pour un fait biologique.
Quand la question finit par se poser, elle prend presque toujours la même forme : sommes-nous faits pour cela ? « Fait pour » appartient au vocabulaire de la conception. Une clé est faite pour une serrure, un marteau pour un clou, et dans les deux cas quelqu’un a voulu cet ajustement. L’évolution travaille sans intention et sans cahier des charges, de sorte que la formule glisse d’un constat vers une prescription sans que celui qui l’emploie s’en aperçoive.
Le glissement sert les deux camps avec la même efficacité. D’un côté : c’est notre nature, donc l’infidélité est une défaillance. De l’autre : la nature dit autre chose, donc la fidélité est une contrainte artificielle, et y manquer se comprend. Ces deux raisonnements passent d’un fait à une norme par le même chemin, et ils échouent au même endroit.
Une réponse par oui ou par non est hors d’atteinte, et le défaut tient à la question. Elle en mélange trois, qui appellent trois méthodes et se répondent avec trois degrés de certitude : ce que notre lignée a fait, ce que les humains font, et ce qu’il faudrait faire. Les deux premières admettent des réponses, inégales mais réelles. La troisième est une question morale, et aucune mesure ne la tranchera. Ce qu’il reste à faire, nommer sa propre part, est le déplacement final du papier sur le mot « société ».
« L’homme » désigne en français l’espèce et le mâle (l’anglais dispose de man et de human, le français fait porter les deux au même mot), et cette ambiguïté sert le débat plus qu’elle ne le gêne : la question est presque toujours posée à propos des hommes tout en prétendant parler de l’humanité. Chaque statistique reste ici attachée au sexe sur lequel elle a été établie.
La morale sexuelle, le droit du mariage, le polyamour comme mouvement social, la théologie du mariage et la thérapie de couple restent en dehors (signalés au passage, jamais traités).
1. Trois choses portent le même nom
Presque tout le désordre de ce débat vient d’un mot qui recouvre trois propriétés distinctes. La revue de 2002 sur les oiseaux, présentée plus bas, les sépare déjà (Griffith et al. 2002). Maren Huck, Anthony Di Fiore et Eduardo Fernandez-Duque les séparent de nouveau en 2020, dans une revue consacrée à cette confusion terminologique chez les primates non humains (notre propre espèce reste hors de leur champ) : la monogamie sociale désigne l’unité de vie et d’élevage, la monogamie sexuelle l’exclusivité des rapports, la monogamie génétique l’origine réelle des descendants (Møller 2003; Huck et al. 2020).
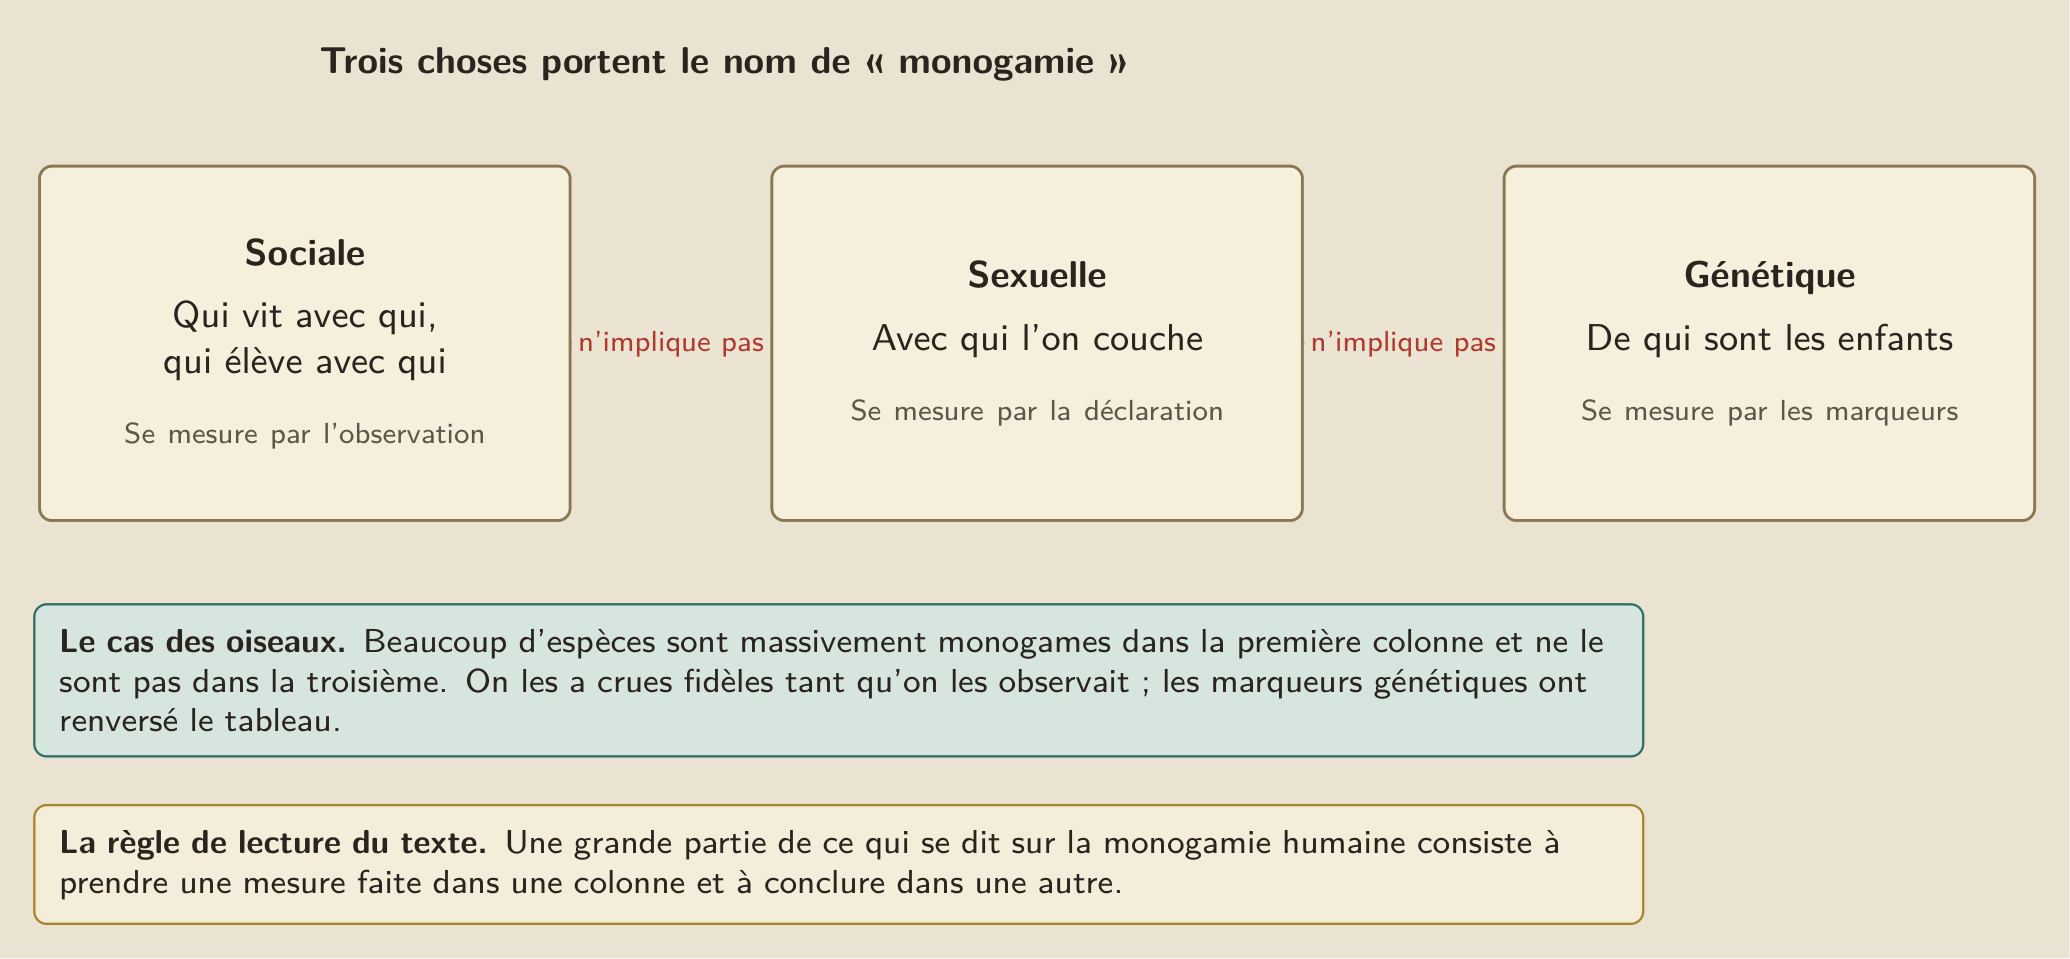
Elles peuvent se dissocier, et le cas d’école vient des oiseaux (Griffith et al. 2002). On les tenait pour fidèles tant qu’on les observait à la jumelle (Griffith et al. 2002). Les marqueurs génétiques ont renversé ce tableau : dans la revue que Simon Griffith, Ian Owens et Katherine Thuman ont publiée dans Molecular Ecology en 2002, une part des jeunes des espèces socialement monogames vient d’un partenaire extérieur au couple (Griffith et al. 2002; Brouwer et Griffith 2019). Lyanne Brouwer et Griffith le confirment dans la même revue dix-sept ans plus tard (Griffith et al. 2002; Brouwer et Griffith 2019).
La dispersion, elle, interdit toute moyenne. La proportion de jeunes issus d’un partenaire extérieur s’étend de valeurs quasi nulles à plus de la moitié de la couvée selon l’espèce, et Marion Petrie et Bart Kempenaers ont montré dès 1998 qu’elle varie aussi entre populations d’une même espèce (le chiffre dépend donc du lieu autant que du taxon) (Griffith et al. 2002; Petrie et Kempenaers 1998). Une phrase de la forme « les oiseaux sont fidèles » reste vide tant que l’espèce n’est pas nommée, et son inverse ne vaut pas mieux.
Une quatrième catégorie manque en outre au vocabulaire courant : la monogamie en série, c’est-à-dire une succession d’unions exclusives (divorcer, puis se remarier), tombe entre l’union unique pour la vie et la pluralité simultanée sans se ranger dans l’une ou l’autre (De La Croix et Mariani 2015; Borgerhoff Mulder 2009). Ce mot absent brouille le débat, alors que la chose décrit pour une large part le régime des sociétés où le divorce est accessible (De La Croix et Mariani 2015; Wang et Zhou 2010).
Sa place exacte est discutée, et la discussion est éclairante (De La Croix et Mariani 2015; Borgerhoff Mulder 2009). Un homme qui a trois épouses successives et un homme qui en a trois simultanées produisent, du point de vue de la répartition des partenaires dans une population, des effets moins éloignés que ne le suggère la différence morale que nous plaçons entre eux (De La Croix et Mariani 2015; Borgerhoff Mulder 2009). Dans la Review of Economic Studies de 2015, De La Croix et Mariani traitent la monogamie sérielle comme une polygynie étalée dans le temps ; Monique Borgerhoff Mulder, dans Human Nature en 2009, trouve chez les Pimbwe de Tanzanie que les femmes sont les premières bénéficiaires des mariages successifs, et propose d’y voir une polyandrie autant qu’une polygynie (une revue d’économie et une revue d’anthropologie, sur le même objet) (De La Croix et Mariani 2015; Borgerhoff Mulder 2009). Le point reste ouvert ici.
De ces distinctions sort une règle de lecture. Une part de ce qui se dit sur la monogamie humaine consiste à prendre une mesure faite dans une de ces colonnes et à conclure dans une autre : on cite une fréquence d’infidélité déclarée pour trancher une question de régime d’espèce, ou un taux de paternité pour trancher une question de désir. La prochaine fois qu’un chiffre sur la monogamie vous passe sous les yeux, de laquelle des trois parle-t-il ?
2. Ce que dit le corps, et avec quelle marge
Chez les primates, l’écart de taille entre mâles et femelles suit l’intensité de la compétition entre mâles, avec deux réserves (Winkler et al. 2024).
La première est une exception nommée : chez les colobines d’Asie, Cyril Grueter et Carel van Schaik ont montré en 2009 que la compétition entre mâles n’explique pas la variation, et que c’est l’organisation sociale qui la prédit (Plavcan 2012; Grueter et Schaik 2009; Winkler et al. 2024). La seconde vient d’une synthèse de soixante-dix-sept travaux comparatifs, en 2024 : ce qui prédit l’écart de taille est la sélection qui s’exerce avant l’accouplement, et non celle qui s’exerce après (Plavcan 2012; Grueter et Schaik 2009; Winkler et al. 2024). Les deux marqueurs du corps, l’écart de taille et la taille des testicules, mesurent donc deux régimes dissociables.
Michael Plavcan a repris ce dossier en entier dans Human Nature en 2012 (l’écart se lit sur la masse du corps et sur la canine) : les espèces où quelques mâles monopolisent l’accès aux femelles sont celles où ces mâles sont les plus grands (Plavcan 2012; Grueter et Schaik 2009; Winkler et al. 2024). Le rapprochement est ancien (Leutenegger et Kelly 1977; LEUTENEGGER 1978; Møller 1988; Gordon 2013, 2025). Walter Leutenegger et James Kelly l’avaient posé dans Primates en 1977, et Leutenegger l’avait repris dans Nature l’année suivante (Leutenegger et Kelly 1977; LEUTENEGGER 1978; Møller 1988; Gordon 2013, 2025). L’humain occupe une position intermédiaire, au-dessus des espèces strictement monogames et sans commune mesure avec le gorille (Leutenegger et Kelly 1977; LEUTENEGGER 1978).
La taille relative des testicules suit, elle, l’intensité de la compétition spermatique (un rapport à la masse du corps, mesuré espèce par espèce) (Winkler et al. 2024). Anders Møller avait établi ce lien chez les primates en 1988, dans le Journal of Human Evolution (Leutenegger et Kelly 1977; LEUTENEGGER 1978; Møller 1988; Gordon 2013, 2025). Chez l’humain, la taille relative reste modeste au regard du chimpanzé (Møller 1988; Simmons et al. 2004). Leigh Simmons et ses collègues ont repris la question sur notre espèce en 2004 dans Animal Behaviour : un régime ancestral où plusieurs mâles s’accoupleraient couramment avec la même femelle dans un intervalle court devient peu vraisemblable (Møller 1988; Simmons et al. 2004).
Les deux marqueurs pointent dans la même direction, et le lecteur pressé conclura à une polygynie légère ancestrale. La conclusion est raisonnable à condition de garder sa marge : Plavcan décrit des régularités comparatives assorties d’exceptions, pas une lecture directe du régime dans l’os ou dans l’organe (Plavcan 2012; Grueter et Schaik 2009; Winkler et al. 2024).
La prudence devient obligatoire dès qu’on passe aux fossiles. Adam Gordon a dressé l’état des lieux du dimorphisme chez Australopithecus en 2013, puis mesuré la puissance statistique de ces estimations dans le Journal of Human Evolution en 2025 (Leutenegger et Kelly 1977; LEUTENEGGER 1978; Møller 1988; Gordon 2013, 2025). Il décrit un circuit fermé : les échantillons sont petits, l’attribution sexuelle des spécimens est incertaine, la taille sert à sexer les restes, et les restes ainsi sexés servent ensuite à estimer la différence de taille (Gordon 2013, 2025). Les fossiles ne trancheront donc rien ici. Ce que l’anatomie établit se formule mieux comme une plage que comme un régime : elle borne l’espace des systèmes plausibles pour notre lignée, autour d’une polygynie légère, sans désigner l’arrangement dont l’espèce serait porteuse. Est-ce assez pour répondre à la question du titre ?
3. Deux articles, la même semaine, deux causes opposées
En juillet 2013, deux équipes publient à quelques jours d’intervalle, l’une dans les PNAS, l’autre dans Science, deux explications incompatibles de la même chose (des reconstructions comparatives sur arbres phylogénétiques, le seul instrument disponible sur ce terrain) (Opie et al. 2013, 2014; Lukas et Clutton-Brock 2013; Dixson 2013; Lukas et Clutton-Brock 2014).
Christopher Opie, Quentin Atkinson, Robin Dunbar et Susanne Shultz font évoluer la monogamie sociale des primates en réponse au risque d’infanticide par les mâles (une analyse comparative bayésienne, sur l’ordre des primates seul) : quand un mâle nouveau venu peut tuer les petits qu’il n’a pas engendrés, rester auprès de la femelle et les protéger devient payant (Opie et al. 2013). Dieter Lukas et Tim Clutton-Brock la font apparaître, chez les mammifères en général, là où les femelles vivent solitaires et dispersées, un mâle ne pouvant alors en monopoliser plusieurs ; dans leur analyse, l’infanticide arrive après le passage et ne le cause pas (Lukas et Clutton-Brock 2013).
En 2014, Lukas et Clutton-Brock publient dans les PNAS une réfutation frontale (neuf mois séparent l’article et sa réfutation), où l’association entre infanticide et monogamie se révèle inconstante et dépendante de l’ordre supposé des transitions (Opie et al. 2013, 2014; Lukas et Clutton-Brock 2013; Dixson 2013; Lukas et Clutton-Brock 2014). Opie et Shultz répondent la même année sous un titre qui ne cède rien, Infanticide still drives primate monogamy (Opie et al. 2013, 2014; Lukas et Clutton-Brock 2013; Dixson 2013; Lukas et Clutton-Brock 2014). Alan Dixson avait déposé une troisième critique dès 2013, dans les mêmes PNAS : l’échange complet compte quatre pièces, pas deux (Lukas et Clutton-Brock 2014; Opie et al. 2014; Dixson 2013).
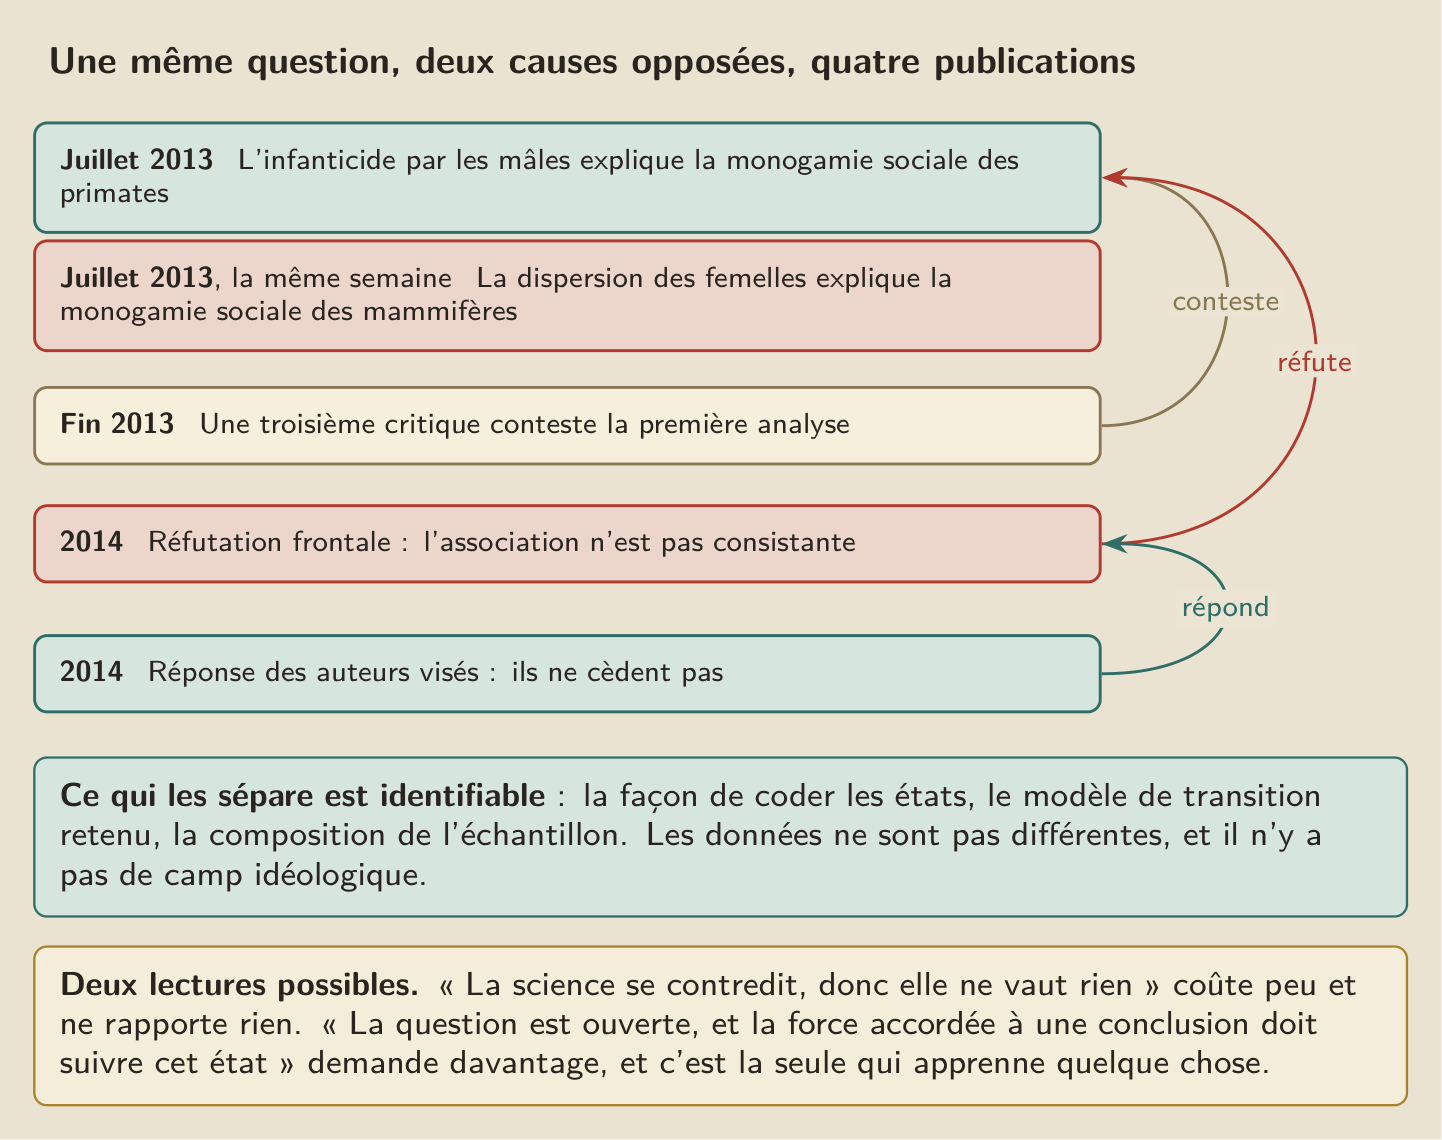
Ce qui sépare ces équipes se lit néanmoins dans leurs textes (Opie et al. 2013, 2014; Lukas et Clutton-Brock 2013; Dixson 2013; Lukas et Clutton-Brock 2014). Le désaccord porte sur des choix de méthode identifiables : la manière de coder les états, le modèle de transition retenu, la composition de l’échantillon (Lukas et Clutton-Brock 2014; Opie et al. 2014).
Un lecteur peut tirer deux leçons opposées d’une telle scène. La première est commode : la science se contredit, donc elle ne vaut rien, donc chacun garde son opinion. La seconde coûte un peu d’effort et rend davantage : la question est ouverte, les deux analyses sont défendables, et la force qu’on accorde à une conclusion doit suivre cet état plutôt que la conviction de celui qui la cite. Devant un débat public qui invoque « ce que dit la science » sur l’origine de la monogamie, laquelle des deux analyses reconnaissez-vous ?
4. Ce que font les humains
L’ethnographie change d’échelle et de méthode. Son tableau se résume d’ordinaire à un chiffre qui se manie mal (De La Croix et Mariani 2015; Murdock 1967). Une majorité des sociétés répertoriées par George Peter Murdock dans l’Ethnographic Atlas, paru dans Ethnology en 1967, autorise la polygynie (le recensement compte des sociétés, une par une, quelle que soit leur taille) (De La Croix et Mariani 2015; Murdock 1967). L’exclusivité est donc une norme minoritaire à l’échelle des sociétés connues (Murdock 1967; Gray 1996).
Dans ces mêmes sociétés, la majorité des unions effectivement contractées sont monogames, la pluralité d’épouses restant le fait d’une fraction des hommes : Melvin Ember, Carol Ember et Bobbi Low ont comparé en 2007, dans Cross-Cultural Research, les explications concurrentes de cet écart (Ember et al. 2007). Les deux faits sont vrais ensemble. Confondre ce qu’une société autorise et ce que ses membres pratiquent fabrique des erreurs dans les deux sens, puisque chaque camp cite la moitié du couple qui l’arrange.
Chez les chasseurs-cueilleurs contemporains, convoqués comme témoins d’un état ancien, la monogamie sociale prédomine et la polygynie reste minoritaire (Marlowe 2003; Marlowe 1999). Frank Marlowe, qui avait travaillé chez les Hadza de Tanzanie avant de passer au crible en 2003 le système d’accouplement des chasseurs-cueilleurs du Standard Cross-Cultural Sample (un échantillon de sociétés observées, non de populations préhistoriques), y trouve une dépendance aux conditions matérielles : plus la contribution des hommes à la subsistance est élevée, plus la société est monogame (Marlowe 2003; Marlowe 1999).
Ces peuples sont cependant nos contemporains et non nos ancêtres, et leur présent ne se lit pas comme notre passé (Marlowe 2003; Marlowe 1999). Quant au Standard Cross-Cultural Sample lui-même, Patrick Gray en a testé les biais par simulation en 1996, et ce test compte au moment où l’on s’appuie sur ses chiffres (Murdock 1967; Gray 1996).
Vient alors la question de savoir si l’exclusivité est une règle que nous nous sommes donnée. Une règle qu’on s’est imposée a une date et des raisons. Une hypothèse discutée est celle de Joseph Henrich, Robert Boyd et Peter Richerson, parue en 2012 dans les Philosophical Transactions of the Royal Society B (De La Croix et Mariani 2015; Henrich et al. 2012). La monogamie normative, interdite de pluralité par la loi et la coutume plutôt que par la rareté des ressources, s’est diffusée récemment et demande une explication, ce qui la distingue d’un état naturel (Henrich et al. 2012; MacDonald 1995).
Les mécanismes avancés pour cette diffusion, dont la réduction du nombre d’hommes durablement non mariés et ses effets supposés sur la violence, restent des hypothèses argumentées (De La Croix et Mariani 2015; Henrich et al. 2012). La version qu’en donne Kevin MacDonald en 1995 a paru dans le même numéro que ses critiques, dont celle d’Ulrich Mueller (Politics and the Life Sciences, un numéro monté en débat), et le débat était encore rouvert dans Social Forces en 2001 (MacDonald 1995; Mueller 1995; MacDonald 2001).
Deux modèles concurrents existent, et leur existence est en elle-même une information. Chris Bauch et Richard McElreath, dans Nature Communications en 2016 (un modèle formel, pas une mesure de terrain), font émerger la monogamie imposée de la dynamique des infections sexuellement transmissibles combinée à une punition coûteuse, sans recourir à un avantage de groupe (Bauch et McElreath 2016). Laura Fortunato et Marco Archetti l’expliquent en 2010 par la maximisation de la fitness inclusive, dans des contextes où le patrimoine se transmet mal quand on le divise (un modèle lui aussi, publié en biologie de l’évolution) (FORTUNATO et ARCHETTI 2010; Cowlishaw et Mace 1996).
Trois explications formelles pour un seul fait observé : la situation est plus instructive qu’un embarras. Les causes candidates laissent des traces trop semblables pour qu’on les départage avec les données disponibles. Devant l’une des trois présentée seule, comme l’explication de la monogamie, que penser du sérieux de ce qu’on lit ? Le choix attend des mesures encore à faire.
L’idée que l’exclusivité serait une règle que nous nous sommes donnée, et non un fait de nature, en sort coupée en deux. La règle désigne un objet réel, discuté et modélisé de trois façons, et cette part de l’idée tient (Henrich et al. 2012; MacDonald 1995). L’assurance avec laquelle on saurait pourquoi et comment, elle, ne tient pas (MacDonald 1995; Mueller 1995; MacDonald 2001).
Une autre idée reçue demande vérification : cette règle n’aurait jamais été remise en cause. Elle est fausse (Levine et al. 2018). L’exclusivité de couple a été contestée et expérimentée de façon répétée et organisée, des communautés américaines du dix-neuvième siècle, dont Yaacov Oved a retracé l’histoire et dont celle d’Oneida pratiquait le « mariage complexe », aux mouvements de réforme du mariage dont Jacqueline Beatty rend compte en 2021 pour la même période (Oved 2017; Beatty 2021). Oved et Beatty écrivent de l’histoire et ne comptent rien (l’effectif manque des deux côtés) : la contestation a existé, elle fut organisée, son ampleur leur échappe (Oved 2017; Beatty 2021).
Aujourd’hui, la contestation se mesure (Levine et al. 2018). Dans l’échantillon probabiliste national américain analysé par Ethan Czuy Levine et ses collègues en 2018 (l’enquête nationale de 2012 sur la santé et le comportement sexuels), 89 pour cent des personnes interrogées décrivent une relation monogame, 4 pour cent une relation ouverte, et 8 pour cent une non-monogamie sans accord du partenaire (Haupert et al. 2017; Levine et al. 2018). Dans les deux échantillons de célibataires américains que Haupert et son équipe ont réunis en 2017 pour le Journal of Sex and Marital Therapy, 21,9 et 21,2 pour cent déclarent avoir vécu au moins une fois une relation non monogame consentie, proportion stable selon l’âge, le revenu, la religion ou la région, et variable selon le sexe et l’orientation (Haupert et al. 2017; Levine et al. 2018).
Les deux mesures portent sur des populations distinctes et sur des questions distinctes : la première décrit une situation présente dans la population générale, la seconde une expérience de vie chez des célibataires (des échantillons par quotas, ce qui n’est pas un tirage au sort) (Levine et al. 2018; Haupert et al. 2017). Les additionner, ou les substituer l’une à l’autre, fabrique un chiffre qu’aucune des deux ne porte (Haupert et al. 2017; Levine et al. 2018).
Dans les sociétés à divorce accessible, le régime effectif tient de la monogamie en série (ce que relèvent les taux de divorce et de remariage, là où ils sont tenus), ce qui laisse l’opposition entre monogamie et polygamie mal ajustée à ce qui s’y passe (De La Croix et Mariani 2015; Wang et Zhou 2010).
5. De qui sont les enfants
Chacun a entendu qu’un enfant sur dix, parfois un sur trois, serait d’un autre homme que son père officiel (Larmuseau et al. 2017). Les tests de paternité disent autre chose (Larmuseau et al. 2017). Dans une population afrikaner d’Afrique du Sud, sur 1273 conceptions réparties sur 330 ans et vingt-trois familles, l’étude que Greeff et Erasmus ont publiée dans Heredity en 2015 donne un taux de paternité hors couple de 0,9 pour cent, avec un intervalle de confiance de 0,4 à 1,5 (Greeff et Erasmus 2015; Larmuseau et al. 2017). L’équipe de Maarten Larmuseau, en 2017, sur la population néerlandaise et par une méthode généalogico-génétique appuyée sur 1013 fécondations, obtient 0,96 pour cent par génération sur quatre siècles (Greeff et Erasmus 2015; Larmuseau et al. 2017). Deux équipes, deux continents, une même approche (des généalogies recoupées par le chromosome Y), un même ordre de grandeur : autour de un pour cent (Greeff et Erasmus 2015; Larmuseau et al. 2017).
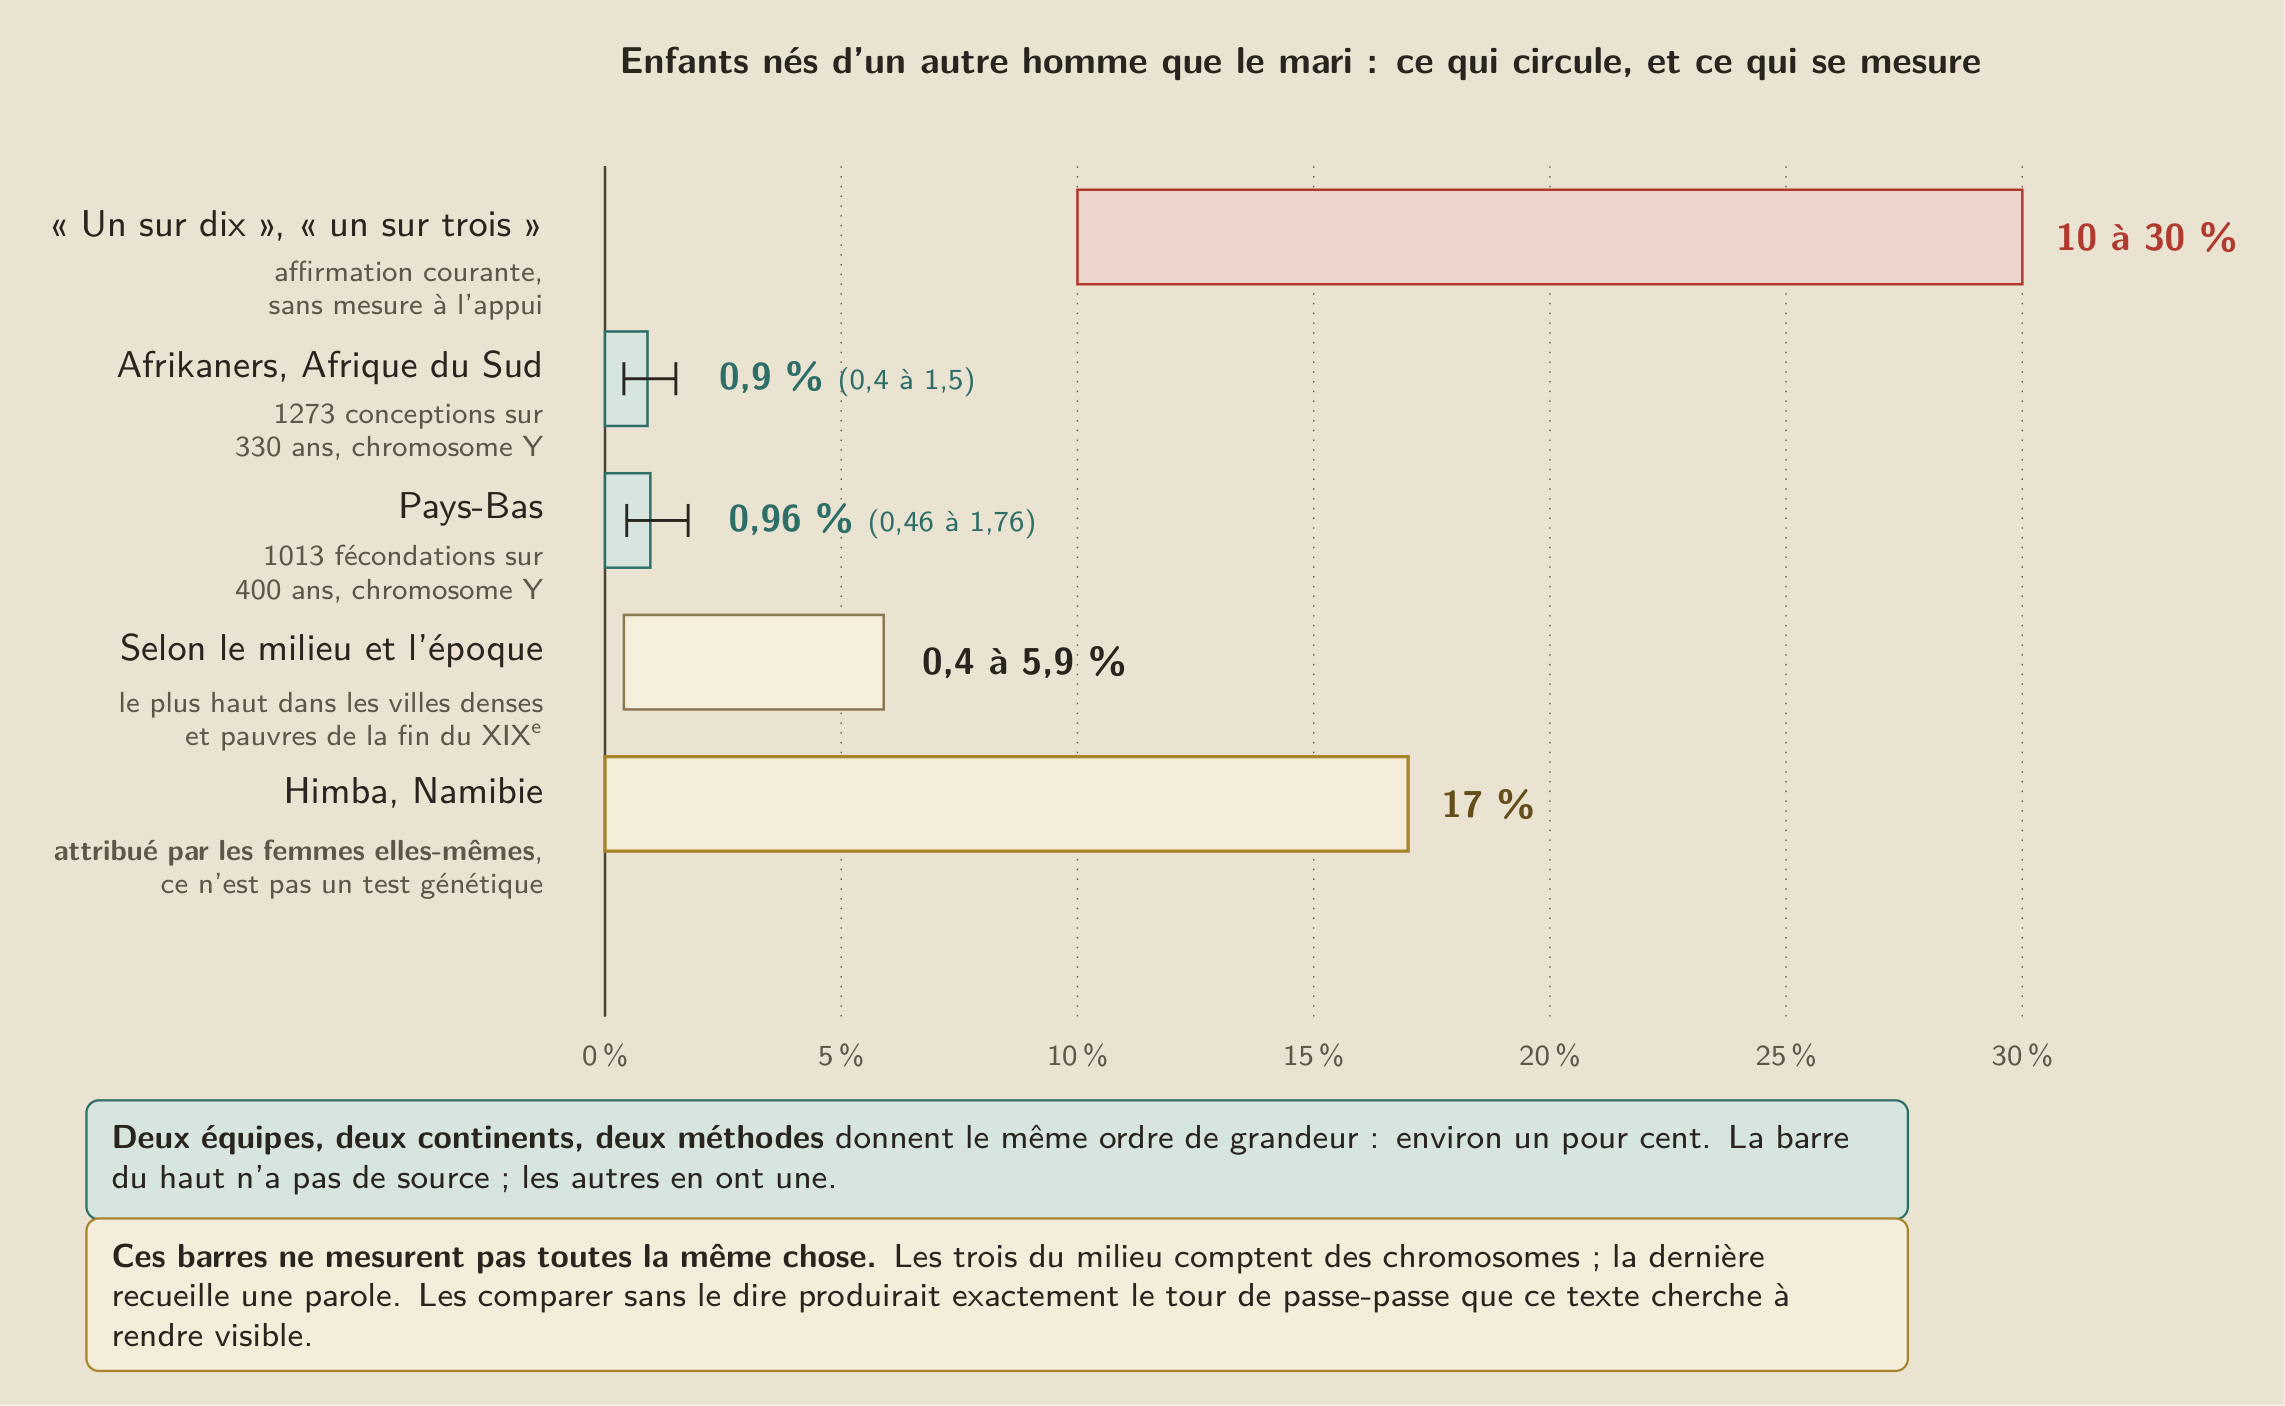
Ce résultat vaut pour sa méthode autant que pour son fond. Les taux à deux chiffres ont été cherchés pour eux-mêmes, et aucune mesure sérieuse ne les soutient dans ces populations (le constat porte sur ces deux lignées documentées, et il s’arrête là) (Greeff et Erasmus 2015; Larmuseau et al. 2017). Le chiffre d’un sur dix, et à plus forte raison celui d’un sur trois, ne sort d’aucune généalogie comptée (Larmuseau et al. 2017).
Le taux n’a pourtant rien d’une constante d’espèce (Larmuseau et al. 2019; Larmuseau et al. 2016). Larmuseau et son équipe l’ont reconstruit sur cinq siècles dans les Pays-Bas méridionaux et publié dans Current Biology en 2019 : il va de 0,4 à 5,9 pour cent selon le milieu et l’époque (Larmuseau et al. 2019; Larmuseau et al. 2016). Le pic se trouve dans les villes denses, chez les familles de faible statut socio-économique (du plancher au pic, un facteur proche de quinze) (Larmuseau et al. 2019).
La généralisation inverse serait tout aussi fautive. Chez les Himba de Namibie, l’enquête de Brooke Scelza parue dans Biology Letters en 2011 relève 17 pour cent de naissances au sein du mariage attribuées par les femmes elles-mêmes à un autre homme que leur mari, dans un contexte où ces relations sont connues et socialement reconnues (Scelza 2011). La précision compte, et elle est de Scelza : ce sont des attributions déclarées par les intéressées, pas des tests génétiques, donc une autre mesure que les précédentes (Scelza 2011). L’existence de populations à taux élevé interdit de conclure que l’humain serait génétiquement monogame, comme le taux bas européen interdit de conclure à l’infidélité généralisée. Ce qui résiste aux deux, c’est la variabilité selon les conditions.
Ce chiffre de un pour cent a une conséquence théorique que ses auteurs relèvent eux-mêmes (Larmuseau et al. 2017). Une hypothèse répandue veut que les femmes aient intérêt à une double stratégie : obtenir l’investissement d’un compagnon stable tout en concevant avec un autre, jugé de meilleure qualité génétique (Larmuseau et al. 2017). Si elle décrivait un comportement répandu, elle laisserait une trace dans les taux de paternité, et cette trace n’apparaît pas dans les populations étudiées (l’argument vaut là où la mesure existe) : Larmuseau et son équipe en tirent explicitement, dans l’article de 2017, que leurs résultats la mettent en difficulté (Greeff et Erasmus 2015; Larmuseau et al. 2017).
L’exemple vaut pour sa forme plus que pour son contenu. Une hypothèse séduisante, cohérente, cent fois répétée, se heurte à une mesure ennuyeuse et en sort affaiblie. Ce qui l’a mise en difficulté tient en des chromosomes comptés dans des généalogies, sans objection morale et sans argument de principe (Greeff et Erasmus 2015; Larmuseau et al. 2017). Combien de vos certitudes sur ce sujet ont déjà rencontré leur mesure ?
Ces chiffres portent leurs limites avec eux (Larmuseau et al. 2017; Greeff et Erasmus 2015). Les mesures généalogico-génétiques portent sur des lignées sélectionnées par la survie des archives et par le consentement des participants (Greeff et Erasmus le disent eux-mêmes dans leurs limites), ce qui se déclare avant d’en tirer une moyenne d’espèce (Greeff et Erasmus 2015). Les taux d’infidélité issus d’enquêtes déclaratives, en outre, mesurent autre chose que la paternité (Greeff et Erasmus 2015; Scelza 2011).
Mick Couper et Benjamin Rowe ont montré dès 1996, dans Public Opinion Quarterly, que l’anonymat du mode de recueil déplace les réponses, et les enquêtes nationales américaines de Michael Wiederman en 1997 puis de Lindsay Labrecque et Mark Whisman en 2017 restent des déclarations (Wiederman 1997; Labrecque et Whisman 2017; Couper et Rowe 1996). Une enquête sur les rapports extraconjugaux et une reconstruction généalogico-génétique répondent à deux questions différentes, et les faire dialoguer sans le dire produit des chiffres qui semblent se contredire (Wiederman 1997; Labrecque et Whisman 2017; Couper et Rowe 1996).
6. Ce qui se passe dans le cerveau, et ce que cela n’établit pas
Le campagnol des prairies ouvre ce dossier, avec une expérience simple. James Winslow et ses collègues ont montré dans Nature en 1993 qu’en manipulant l’action de la vasopressine dans son cerveau, on modifie la formation du lien de couple : le résultat vient d’une intervention, pas d’une corrélation observée (Winslow et al. 1993; Lim et Young 2004). Miranda Lim et Larry Young en ont décrit les circuits en 2004 (chez le campagnol, et pour ce seul neuropeptide) (Winslow et al. 1993; Lim et Young 2004). De là à nous, il y a un pas, et une expérience sur le campagnol ne le franchit pas à elle seule. Le campagnol et l’humain sont séparés par une longue distance évolutive, et la popularité de ce modèle animal excède ce qu’il autorise à conclure sur nous.
Chez l’humain, Hasse Walum et ses collègues ont rapporté en 2008, sur une cohorte de jumeaux suédois (un devis de gène candidat, tel qu’il se pratiquait alors), une association entre une variation du gène du récepteur de la vasopressine et des mesures de lien de couple chez les hommes, y compris la qualité conjugale telle que la perçoivent leurs épouses (Walum et al. 2008; Makhanova et al. 2025). La même équipe a rapporté en 2012 une association du même type pour le récepteur à l’ocytocine (la même famille d’études, donc les mêmes réserves) (Walum et al. 2012; Ahern et al. 2021).
Ces résultats appellent toutefois une réserve (Duncan et Keller 2011; Hart et al. 2012; Hewitt 2011; Opitz et al. 2021). Les études associant un gène candidat à un comportement social ont un taux de réplication faible (Duncan et Keller 2011; Hart et al. 2012; Hewitt 2011; Opitz et al. 2021). C’était la pratique des années deux mille (Duncan et Keller 2011). Laramie Duncan et Matthew Keller en ont fait la revue critique sur dix ans dans l’American Journal of Psychiatry en 2011, Amy Hart et ses collègues ont publié l’année suivante un échec de réplication sur ce type de devis, et la revue Behavior Genetics avait durci sa politique éditoriale dès 2011, pour cette raison même (Duncan et Keller 2011; Hart et al. 2012; Hewitt 2011; Opitz et al. 2021).
Sur un autre trait social que le lien de couple, Timm Opitz et ses coauteurs ont repris en 2021, sur un protocole préenregistré, les associations entre trois marqueurs candidats (DRD4 VNTR 48 bp, OXTR rs53576 et COMT rs4680) et des mesures de théorie de l’esprit (Opitz et al. 2021). Cette réplication ne retrouve aucune association pour ces marqueurs, y compris dans les analyses longitudinales et de robustesse (Duncan et Keller 2011; Hart et al. 2012; Hewitt 2011; Opitz et al. 2021). Ses auteurs s’en tiennent pourtant à une conclusion prudente : ces devis ne permettent pas encore de conclure fermement sur l’influence des gènes dans ce domaine (Opitz et al. 2021).
L’attachement durable et l’intérêt pour la nouveauté sexuelle sont deux dispositions documentées qui coexistent chez l’humain : l’habituation du désir à un partenaire donné se mesure depuis les travaux de William O’Donohue et James Geer, en 1985 (une mesure d’excitation en laboratoire, sur des volontaires) (O’Donohue et Geer 1985; Hughes et al. 2020). Citer l’une contre l’autre relève d’un choix rhétorique, pas d’un résultat (O’Donohue et Geer 1985; Hughes et al. 2020). Surtout, montrer qu’un mécanisme cérébral soutient l’attachement laisse entière la question de savoir si la fidélité est facile, et celle de savoir si elle est due. Un mécanisme explique une capacité ; il ne délivre pas d’obligation.
La confusion est commode. Quand on apprend qu’une hormone participe au lien de couple, deux lectures se présentent et une seule est licite. La lecture licite dit que notre espèce dispose d’un équipement qui rend l’attachement durable possible, ce qui est déjà beaucoup et explique pourquoi la question se pose à nous et pas à toutes les espèces (Winslow et al. 1993; Lim et Young 2004).
La lecture illicite dit que cet équipement nous destine à un arrangement, et elle ajoute à une observation quelque chose qu’aucune observation ne contient. Laquelle des deux avez-vous rencontrée, la dernière fois qu’un titre vous a parlé de l’hormone de l’amour ? Le même raisonnement vaut dans l’autre sens : découvrir un mécanisme qui pousse à la nouveauté n’excuserait rien, pour la même raison (O’Donohue et Geer 1985; Hughes et al. 2020).
7. Le pas qu’on ne peut pas faire
Accordons tout, pour un instant : le régime d’accouplement de notre lignée serait connu avec certitude. Que saurions-nous de ce qu’il convient de faire ? Encore rien. Un ensemble d’énoncés purement descriptifs implique un énoncé normatif seulement si l’on y ajoute une prémisse normative. David Hume l’écrit dès 1739 dans le Traité de la nature humaine (livre III, partie I, section I), et la remarque n’est pas restée sans contradiction : John Searle a publié en 1964, dans la Philosophical Review, la tentative la plus célèbre pour franchir ce pas, et elle se discute encore (Hume 1739; Searle 1964). Le passage n’a rien d’automatique, et celui qui le franchit en une phrase doit au moins savoir qu’il l’a franchi (Hume 1739; Searle 1964).
L’appel à la nature, qui tient pour bon ce qui est naturel et pour mauvais ce qui ne l’est pas, figure parmi les erreurs de raisonnement dans l’Encyclopedia of Evolutionary Psychological Science de 2021 (« Appeal to Nature Fallacy » 2021; « THE MORAL RELEVANCE OF NATURALNESS » 2003). Sa forme la plus forte se trouve chez des philosophes qui accordent à la naturalité une pertinence morale (le recueil Is Nature Ever Evil? lui consacre un chapitre entier en 2003) : contrarier durablement une disposition profonde a des coûts réels, et ces coûts comptent (« Appeal to Nature Fallacy » 2021; « THE MORAL RELEVANCE OF NATURALNESS » 2003). Cette version défendable s’arrête avant de dire que le naturel est bon : elle le fait entrer dans le calcul des coûts, sans lui donner le dernier mot.
Le premier camp, sous sa forme la plus solide, dit ceci. Une disposition sélectionnée sur des centaines de milliers de générations ne s’annule pas par décret, et l’organiser contre elle a un prix : les ruptures, la jalousie, la souffrance qui accompagne les arrangements ouverts chez ceux qui les tentent sans y être portés, tout cela existe et se paie en vies réelles. Une institution qui protège de ce prix mérite mieux qu’un haussement d’épaules, et c’est à qui veut la démonter, dit ce camp, d’apporter la preuve. Cet argument échappe à l’erreur naturaliste tant qu’il parle de coûts et non de devoirs, et l’ampleur des coûts qu’il désigne est une question de mesure.
Le second dit ceci. Exiger d’un être humain ce que sa biologie rend difficile fabrique de la culpabilité pour rien, et cette souffrance est aussi réelle que l’autre : les vies gâchées par la honte, les couples maintenus par la peur du jugement, le silence autour de désirs ordinaires (des coûts dont l’ampleur n’est pas chiffrée ici). Une norme qui produit cela doit justifier ce qu’elle apporte en échange, et invoquer la tradition ne suffit pas. Tant qu’il porte sur des coûts, celui-là non plus ne bascule pas dans l’erreur naturaliste, et l’ampleur des souffrances qu’il désigne est une question de mesure.
Les deux versions fortes disent la même chose sous des signes opposés : un arrangement a des conséquences, et les conséquences comptent. Cette dernière proposition est elle-même un choix moral, assumé ici plutôt qu’établi, et quelqu’un qui évaluerait une institution sur autre chose que ses effets ne commettrait aucune faute de raisonnement. Chacune des deux tient debout sans la question de départ. C’est en la convoquant qu’elles se dégradent toutes deux en appel à la nature, chacune allant chercher dans la biologie une autorité que leur argument n’exigeait pas.
Le test de symétrie, posé dans le papier sur les arguments pour l’islam, s’applique dès lors (il défait l’inférence et ne tranche rien du fait). Le même fait, une fois établi, est invoqué par les deux camps à l’appui de conclusions opposées, ce qui est le signe qu’il ne fait pas le travail argumentatif qu’on lui prête. Si l’on découvrait demain que notre lignée fut strictement monogame, le partisan de la liberté sexuelle changerait-il d’avis ? Et l’inverse ferait-il renoncer le défenseur de la fidélité ? Quand la réponse est non des deux côtés, le fait servait d’ornement et non d’argument.
D’où deux questions à garder sous la main. Devant quelqu’un qui dit « c’est naturel » ou « ce n’est pas naturel » : à laquelle des trois questions répondez-vous, et qu’est-ce qui changerait à votre conclusion morale si le fait était inverse ? La première désamorce la confusion des objets, la seconde révèle si le fait pesait.
Le standard qu’on impose aux autres vaut pour nos propres explications. Montrer qu’une intuition sur la fidélité a une origine évolutive prévisible laisse sa vérité intacte : une origine ne discrédite une croyance que si le mécanisme qui la produit est insensible à la vérité de ce qu’elle affirme, c’est-à-dire s’il se déclencherait à l’identique que la chose soit vraie ou non. La jalousie ne devient pas illégitime parce qu’elle est ancienne, et la fidélité ne devient pas absurde parce qu’elle est instituée. La thèse centrale serait défaite si l’on montrait qu’une norme sexuelle se déduit validement d’un fait biologique.
8. Ce qui se mesure, une fois la question abandonnée
Renoncer à la question de départ laisse de quoi travailler. Elle se remplace par une autre, qui admet des réponses : qu’est-ce qu’un arrangement donné coûte, à qui, et qu’est-ce qui le rend tenable.
Sur les coûts, il y a des mesures (Ahinkorah 2021; Muhsam 1974; Carmichael 2011). Là où la polygynie est répandue, l’écart d’âge entre époux s’accroît : Sarah Carmichael le relève en 2011 pour le type familial africain, dont la polygynie est l’un des traits (l’âge au premier mariage, dans des pays à faible revenu) (Carmichael 2011). Bright Opoku Ahinkorah, dans une étude de 2021 qui agrège seize enquêtes démographiques et de santé d’Afrique subsaharienne, associe la polygynie à une prévalence plus élevée de violences conjugales (des enquêtes transversales, où l’association ne dit pas le sens de la cause) (Ahinkorah 2021; Muhsam 1974; Carmichael 2011). Ces sources documentent des coûts (Ahinkorah 2021; Muhsam 1974; Carmichael 2011) (Carmichael 2011). Elles ne délivrent en revanche aucun verdict moral, et s’en servir comme d’un argument déguisé referait le glissement du fait à la norme (Ahinkorah 2021; Muhsam 1974; Carmichael 2011).
Les arrangements minoritaires ont leurs coûts aussi, et deux choses s’y confondent (Levine et al. 2018). La non-monogamie consentie fait l’objet d’un stigmate mesurable, infligé par la norme et non produit par l’arrangement : dans les expériences que Terri Conley et son équipe ont publiées en 2012 dans Analyses of Social Issues and Public Policy, les personnes qui la pratiquent sont jugées plus sévèrement sur des dimensions sans rapport avec leur vie amoureuse (Conley et al. 2012; Balzarini et al. 2018). Rhonda Balzarini et son équipe ont repris cette comparaison en 2018 et l’ont trouvée modulée par l’orientation relationnelle de celui qui juge (des jugements portés sur des cas décrits, non sur des vies observées) (Conley et al. 2012; Balzarini et al. 2018).
Quant à la satisfaction relationnelle, elle a été mesurée, et le résultat laisse la question ouverte : chez Levine et ses collègues, les personnes en relation ouverte se disent moins satisfaites que les monogames (Levine et al. 2018). Alicia Rubel et Anthony Bogaert, en 2015 dans le Journal of Sex Research, ne trouvent pas de différence systématique de qualité relationnelle, et Terri Conley et son équipe ont repris la question sur la satisfaction sexuelle en 2018, dans le Journal of Social and Personal Relationships (Rubel et Bogaert 2015; Conley et al. 2018). L’auto-sélection des participants est réelle, et aucune étude longitudinale représentative n’a encore tranché (Rubel et Bogaert 2015; Conley et al. 2018).
La jalousie sexuelle, invoquée comme preuve d’une nature monogame, serait rapportée dans toutes les sociétés documentées, mais aucune des sources lues ici ne mesure cette jalousie, et l’universalité elle-même reste à étayer. Bram Buunk et Ralph Hupka ont montré dès 1987, dans le Journal of Sex Research et par comparaison transculturelle, que ce qui la déclenche change d’une culture à l’autre (Buunk et Hupka 1987; Hupka et Ryan 1990). Hupka et James Ryan ont étendu la comparaison en 1990, dans Behavior Science Research, à l’agression que la situation de jalousie autorise : un universel dont la forme est culturelle reste un universel, et il ne prescrit aucun arrangement (Buunk et Hupka 1987; Hupka et Ryan 1990).
Sur ce qui rend une union durable, il existe un savoir (Karney et Bradbury 1995; Bradbury et Karney 1993). Benjamin Karney et Thomas Bradbury ont rassemblé en 1995, dans le Psychological Bulletin, les études longitudinales de la qualité et de la stabilité conjugales (une revue de théorie, de méthode et de résultats) : les prédicteurs qui ressortent sont d’ordre relationnel et économique (Karney et Bradbury 1995; Bradbury et Karney 1993). Le dimorphisme sexuel n’y figure nulle part (Karney et Bradbury 1995; Bradbury et Karney 1993). Lesquels de ces facteurs pèsent, quand vous jugez qu’un couple tiendra ?
Ces séries de résultats se taisent sur ce pour quoi nous serions faits, et toutes disent quelque chose d’utilisable par quelqu’un qui doit décider. Elles portent sur des conditions, des coûts, des asymétries, des durées. Ce sont les grandeurs sur lesquelles une vie se règle, et elles se mesurent, ce que le régime d’accouplement de nos ancêtres ne sera jamais tout à fait. Leur préférer un témoignage, même nombreux et même sincère, est le pas que le papier sur les arguments pour l’islam refuse d’un bout à l’autre.
La question s’est déplacée vers ce qu’un arrangement coûte et ce qui le rend tenable. Ce que nous sommes ne dit à personne ce qu’il doit faire de sa vie amoureuse, et l’apprendre ne rend pas la réponse plus difficile : cela la remet entre les mains de ceux qu’elle concerne. Une promesse n’a pas besoin d’être naturelle pour être tenue, et elle ne devient pas tenable du seul fait qu’elle le serait.
La règle de l’exclusivité est un arrangement, avec son histoire, ses raisons discutées, ses coûts et ses bénéfices, tenu par des gens qui pour la plupart ne l’ont jamais examiné. L’examiner ne prescrit rien : cela transforme une évidence subie en une chose qu’on peut vouloir.
Bibliographie
S'appuie sur
- le geste de nommer sa part, plutôt que de renvoyer la question à ce dont personne ne répond, dans « La faute à la société » : cause ou excuse ?.
Repris par
- le même glissement, appliqué au goût des formes, et trois affirmations très répandues passées une par une à l'épreuve, dans Notre goût des corps, c'est l'évolution ?.
- la déclaration en clair de cette préférence, et ce qu'elle coûte à qui la refuse, dans Et si les faits ne règlent pas le désaccord ?.
Ce qui a changé
- : La réserve sur les études de gène candidat s'appuie sur une non-réplication précise. Ce qui l'a déclenché : Une réplication préenregistrée de 2021 ne retrouve aucune des associations testées, ce qui donne un cas concret là où le texte n'avait que des revues générales.10.1111/desc.13100
- : Le lien entre écart de taille et compétition entre mâles porte deux réserves, une exception nommée et la nature de la sélection en jeu. Ce qui l'a déclenché : Chez les colobines d'Asie, la compétition entre mâles n'explique pas la variation. Et une synthèse de 77 travaux montre que c'est la sélection pré-copulatoire qui prédit l'écart de taille, ce qui dissocie ce marqueur de celui de la taille des testicules.10.1002/ajp.2069510.1111/ele.14515
- : La séparation entre norme conventionnelle et fait du monde porte son ampleur, et elle est présentée comme graduelle. Ce qui l'a déclenché : Le claim reposait sur un chapitre de synthèse sans chiffre. Une méta-analyse de 2022, sur 18 études et 2707 enfants, la mesure comme modérée, dépendante du critère interrogé, et construite avec l'âge.10.1037/dev0001330
- : Le déplacement final renvoie au papier qui l'établit. Ce qui l'a déclenché : Le ledger de ce texte porte depuis son écriture l'équivalence avec le geste d'un autre papier, et cette phrase n'avait jamais atteint un lecteur.